
Co by měl elektroúchyl vědět o nervech.
Nervy z hlediska elektroúchylova představují vodiče vzruchů, tedy signálů, určených k distribuci. Rychlost šíření vzruchu nervem činí přibližně 120 m/s. V molekulárním měřítku jde o změnu potenciálů na membránách ovlivněných buněk, v globálním měřítku jde o průchod elektrického proudu podél nervu (vnitřkem nervu se proud šíří jedním směrem, povrchem se pak vrací). Nervové vlákno (axon) je ukončeno tzv. nervosvalovou ploténkou. V jejím blízkosti se myelinová pochva vlákna štěpí na větší počet zakončení, obsahujících transmiter aceltylcholin. Ten přenáší vzruch mezi membránami nervových a svalových buněk (které jsou odděleny tzv. synaptickou štěrbinou). Na každé nervosvalové ploténce končí právě jedno nervové vlákno, s výjimkou svalů nitroočních, které ovšem leží mimo oblast elektroúchylných zájmů.
Co by měl elektroúchyl vědět o svalech.
V rámci tématu postačí, probereme-li pouze základní informce o kosterních svalech - hladké a specifické svaly (sval srdeční, kupříkladu) leží mimo oblast elektroúchylného zájmu.
Kosterní svaly se skládají z vláken dvou hlavních typů. Větší vlákna bílé barvy vytvářejí větší sílu kontrakce a jsou schopna vyvinout vyšší rychlost, pomalá červená vlakna jsou menší a jsou inervována menšími nervy. Zatímco bílá vlákna jsou určena k vytváření aktuálního potřebného výkonu, červená vlákna slouží spíše pro trvlou zátěž. Svalová kontrakce je energeticky pokrývána ze tří zdrojů - pro první 1 až dvě sekundy kontrakce pokrývá energetickou potřebu svalu adenozintrifosfát (ATP), jehož úlohu v následujících cca 8 sekundách přebírá kreatinofosfát. Dlouhodobu zátěž pak pokrývá enzymatické štěpení glykogenu na laktát a pyruvát. Z elektroúchlnho hlediska je podstatný adenozintrifosfát, jeho přítomnost je nezbytná pro správnou funkci níže popsané metabolické pumpy K+/Na+, zajišťující přenos vzruchu. Ztráta podílu ATP je při déletrvající stimulaci jednou z příčin "zahlcení" dráhy.
U kosterních svalů rozlišujeme dva typy stažení (kontrakcí). Při izometrické kontrakci se mění napětí (mechanické) svalu, přičemž délka svalu se nemění. Při izotonické kontrakci zůstává napětí svalu stejné a sval se zkracuje. Průběh kontrakce svalu lze znázornit v podobě myografických křivek, ukazujících průběh napětí svalu v závislosti na formě podnětu. V podstatě odlišujeme čtyři základní typy myografických křivek - osamocený podnět (záškub), sumace a superpozice (postupný nárůst tenze při příchodu více podnětů za sebou), které mohou přejít v tetanus, tedy trvalé dosažení mezní tenze svalu. Ten můžemít hladkou formu (v důsledku mnohonásobné sumace), případně vlnitou formu (v důsledku mnohonásobné superpozice).
Přestup signálu z motorického nervu na svalové vlákno probíhá na nervosvalové ploténce.
Co by měl elektroúchyl vědět o vzruchu a membránové teorii.
A jsme u merita věci. Vzruch představuje v normální (i v té úchylné) fyziologii mechanismus, jakým dochází k aktivaci svalu. Na základě dráždivého podnětu vzniká v receptorických buňkách a směřuje podél nervu k efektoru. Mechanismus působení na efektor nejlépe - pro potřeby úchylné obce - popisuje membránová teorie. Podle ní jsou nervové a svalové buňky odděleny od okolního prostředí virtuální membránou (do iontového chemismu raději nebudeme příliš zabíhat), na níž vždy existuje bazální (klidový) potenciál. Membrána je selektivně propustná pro kaliové anionty K+, představující "hradlo" pro řízení odezvy. Membrána v klidovém stavu uzavírá buňku pro natriové kationty Na+, které bazální potenciál snižují. S příchodem vzruchu dochází v oblastech, vzruchem zasažených k otevření membrány pro kationty Na+, které začínají proudit dovnitř buňky a membránu depolarizují. Tento stav trvá (dle typu vzruchu, konkrétní buňky a dalších marginálních parametrů) zhruba 500-1000 us a je někdy nazýván absolutní refrakterní fází (ARF). Po jejím odeznění dojde k přeměně typu propustnosti membrány - uzavře se pro sodné ionty a stane se propustnou pro ionty draselné, které opuštějí vnitřek buňky a vyrovnávají potenciálovou změnu. membrána se repolarizuje a po dobu několika tisíc us blokuje příchod nového vzruchu (s výjimkou vzruchů nadprahových). Tato doba je nazývána relativní RF. Odtud již nepřímo vyplývá úvaha frekvenční bilance hračky - zvyšování frekvence nad cca 200 Hz již (při pulsním řízení) nepřináší efekt. Pro uzavření výkladu je ještě zapotřebí zmínit, co se děje se sodnými ionty v buňce. Jejich koncentrace nevzrůstá (jak by se z mého brutálně zjednodušeného popisu procesu mohlo zdát) nad všechny meze, o odvod se stará draselno-sodná pumpa, poháněná energií fosfátových vazeb, neboť proces je energeticky relativně náročný.
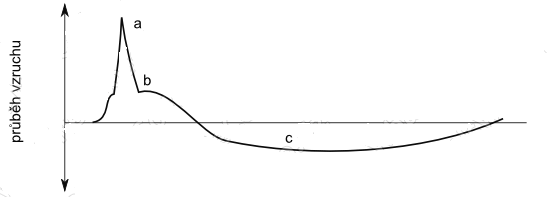
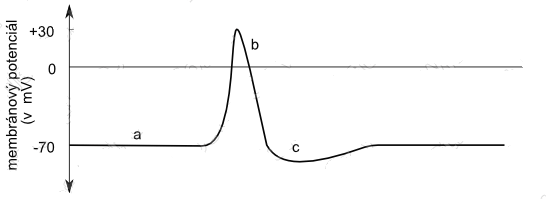
Tolik brutálně zjednodušené teoretické minimum, nyní trochu podrobněji. Nejprve o mebránovém potenciálu. Ten normálně činí cca -72 uV a je stabilní v čase. S příchodem vzruchu dochází k jeho velmi rychlému nárůstu až do hodnoty cca 30 uV (vlivem pronikajícíh sodných iontů), po jejímž dosažení potenciál rychle začíná klesat (odvodem draselných iontů z vlákna axonu) až do hodnoty -80 uV, z níž se již pomaleji vrací k normálnímu klidovému potenciálu -72 uV.
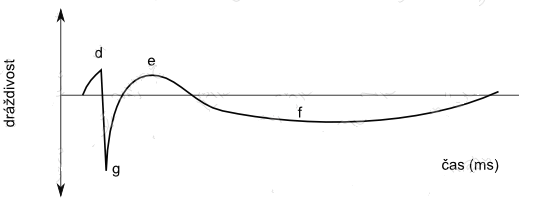
V průběhu zpracování vzruchu se často uvádějí dvě průběhové křivky, zobrazující tzv. cyklus dráždivosti a akční potenciál. Cyklus dráždivosti je tvořen dvojicí vln. Rychlá vlna (úsek d-g na obrázku) odpovídá ARF a v jejím průběhu se prakticky skokem aktivovaná dráždivost snižuje do uzamčené hodnoty, v rámci pomalé vlny (g-e-f) pak dochází postupnému zvyšování dráždivosti s následným omezením citlivosti na vzruch. Tomu odpovídá i křivka akčního potenciálu - během rychlé vlny se akční potenciál ve dvou strmostích prudce zvyšuje a následně (v průběhu úseku f křivky dráždivosti) klesá v pomalé vlně do záporných hodnot.